Влияние блокатора объем-зависимого анионного канала DCPIB на миграцию клеток C127
УДК 577.353.4
Аннотация
Актуальность исследования обусловлена необходимостью изучения роли объем-регулируемых анионных каналов в регуляции клеточной миграции. Сведения о влиянии фармакологического блокирования данных каналов на миграционные процессы остаются неоднозначными. Целью настоящего исследования было оценить влияние селективного блокатора объем-зависимого анионного канала DCPIB в концентрации 5 мкМ на миграцию клеток C127. Миграционную активность оценивали по анализу изображений монослоя клеток после нанесения раны. Для снижения вклада пролиферации в закрытие раневого пространства клетки культивировали в бессывороточной среде. Фотографирование раневого пространства проводили непосредственно после нанесения раневого дефекта, а также через 0, 24 и 48 ч. В качестве основного показателя оценивали степень закрытия раневого пространства. В контрольной группе степень закрытия раны составила 81,4±2,3 % (n=12) через 24 ч и 96,0±0,5 % (n=10) через 48 ч. При воздействии 5 мкМ DCPIB данный показатель составил 36,0±5,3 % (n=13, P<0,05) и 33,7±5,0 % (n=10, P < 0,05), соответственно. Таким образом, 5 мкМ DCPIB существенно снижал закрытие раневого пространства клетками C127 по сравнению с контролем. Полученные результаты свидетельствуют о важной роли объем-зависимого анионного канала в миграционном процессе клеток C127.
Abstract
The relevance of the study is determined by the need to investigate the role of volume-sensitiveanion channels in the regulation of cell migration. Information on the effects of pharmacological blockade of these channels on migratory processes remains ambiguous. The aim of the present study was to evaluate the effect of the selective volume-regulated anion channel blocker DCPIB at a concentration of 5 µM on C127 cell migration. Migratory activity was assessed by image analysis of the cell monolayer after wound induction. To reduce the contribution of proliferation to wound-space closure, the cells were cultured in serum-free medium. Images of the wound area were captured immediately after wound induction, as well as at 0, 24, and 48 h. The degree of wound-space closure was evaluated as the main parameter.In the control group, the degree of wound closure was 81.4±2.3 % (n=12) after 24 h and 96.0±0.5 % (n=10) after 48 h. Following exposure to 5 µM DCPIB, this parameter was 36.0 ± 5.3 % (n=13, P<0,05) and 33.7±5.0 % (n=10, P<0,05), respectively. Thus, 5 µM DCPIB significantly reduced wound-space closure by C127 cells compared with the control. The obtained results indicate an important role of the volume-regulated anion channel in the migratory process of C127 cells.
Ключевые слова: клетки C127; DCPIB; ОЗАК; клеточная миграция; заживление раневого дефекта.
Keywords: C127 cells; DCPIB; VSOR; cell migration; Wound Healing Assay.
Введение
Миграция клеток представляет собой сложный многоэтапный процесс, включающий направленное перемещение клетки, перестройку цитоскелета, динамику клеточной мембраны и координированные изменения транспорта ионов и воды [4, 10, 11]. Для опухолевых клеток миграционная активность имеет особое значение, поскольку участвует в инвазивном росте и метастазировании, а также может быть связана с процессами ангиогенеза [16, 12, 15]. В регуляции клеточной миграции важную роль играют ионные каналы, участвующие, в частности, в поддержании и изменении клеточного объёма.
Объем-зависимый анионный канал (ОЗАК), также известный как Volume-Sensitive Outwardly Rectifying channel (VSOR) канал, является важным компонентом механизмов регуляторного уменьшения объёма клетки (Regulatory volume descrase – RVD). При осмотическом набухании активация ОЗАК способствует выходу ионов Cl- и органических осмолитов, обеспечивая восстановление исходного объёма клетки [3, 7–9, 13, 14]. Во время миграции локальная регуляция клеточного объёма, связанная с процессами RVI (Regulatory Volume Increase) и RVD, может способствовать изменению формы клетки и её направленному перемещению [5, 6, 9]. Вместе с тем данные о функциональной роли ОЗАК в клеточной миграции остаются неоднозначными [1, 5, 6, 9]. Поэтому в настоящей работе мы исследовали влияние селективного блокатора ОЗАК – DCPIB в концентрации 5 мкМ на миграционную активность клеток C127.
Материалы и методы
В эксперименте использовали селективный блокатор ОЗАК – DCPIB (Sigma-Aldrich, США). DCPIB растворяли в диметилсульфоксиде (ДМСО) в 1000-кратной исходной концентрации. Конечная концентрация ДМСО в опытных группах не превышала 0,01 %, при этом данная концентрация растворителя не оказывала существенного влияния на исследуемые показатели. Все эксперименты проводили в соответствии с протоколами, предварительно одобренными Комитетом по биоэтике Института биофизики и биохимии.
Клетки C127 культивировали в среде Dulbecco’s Modified Eagle’s Medium (DMEM; с высоким содержанием глюкозы – 4,5 г/л, с L-глутамином, без бикарбоната натрия; Sigma-Aldrich, Cat. №.D1152-1L) с добавлением 10 % эмбриональной сыворотки теленка и антибиотиков (100 ед./мл пенициллина и 100 мг/мл стрептомицина) при температуре 37°C в атмосфере с 5 % CO2. Концентрацию клеточной суспензии определяли с помощью автоматического счетчика клеток Corning Cell Counter (Corning Inc., США). Жизнеспособность клеток оценивали методом окрашивания трипановым синим, и доля мёртвых клеток в суспензии не превышала 5 %.
Для оценки миграционной активности, клетки высевали в лунки 48-луночного микропланшета по 1×10⁵ клеток в 500 мкл среды DMEM, содержащей 10 % эмбриональной сыворотки теленка, и инкубировали в течение 24 ч при 37 °C и 5 % CO2. После достижения монослоем 90–100 % конфлюэнтности, на его поверхности стерильным наконечником пипетки объемом 200 мкл наносили линейный раневой дефект. Клетки, отделившиеся в результате механического повреждения монослоя, дважды осторожно отмывали фосфатным буфером (PBS, Sigma-Aldrich, Cat. №.P4417). Для снижения влияния пролиферации на закрытие раневого пространства после нанесения раневого дефекта клетки переводили в бессывороточную среду. В контрольные лунки добавляли бессывороточный DMEM, а в экспериментальные – бессывороточный DMEM, содержащий DCPIB.
Микрофотографии раневого пространства получали непосредственно после нанесения дефекта (0 ч), а также через 24 и 48 ч с использованием микроскопа ICX41F (Sunny Optical Technology, Китай) при 40-кратном увеличении, цифровой камеры HY-2307 и программного обеспечения S-EYE (Shenzhen Hayear Electronics, Китай). Полученные изображения анализировали с использованием программы ImageJ и плагина Wound_healing_size_tool.ijm [12]. Площадь и ширину раневого пространства, степень закрытия раны (Wound Closure, %) и скорость закрытия раневого пространства (Rm, мкм/ч) определяли по формулам:
где At=0– исходная площадь раневого пространства после нанесения царапины (в % от общей площади изображения); At=Δh– площадь раневого пространства, определённая через Δt часов после нанесения царапины (в % от общей площади изображения).
где Wi– средняя ширина раневого пространства в начале эксперимента (пиксели); Wf – средняя ширина раневого пространства в конце эксперимента (пиксели); t– продолжительность эксперимента (ч).
Статистическую обработку данных проводили с использованием программы Origin 2021 (OriginLab, Northampton, MA, США). Все данные приведены как среднее ± стандартная ошибка для n экспериментов. Сравнения между двумя экспериментальными группами проводились с использованием t -теста Стьюдента. Различия считались статистически значимыми при P < 0,05.
Результаты и обсуждение
В данной работе мы использовали фиксированную концентрацию DCPIB 5 мкМ, близкую к концентрации полумаксимального блокирования ОЗАК 4,1 мкМ на линии клеток эндотелия легочной артерии быка CPAE [2].
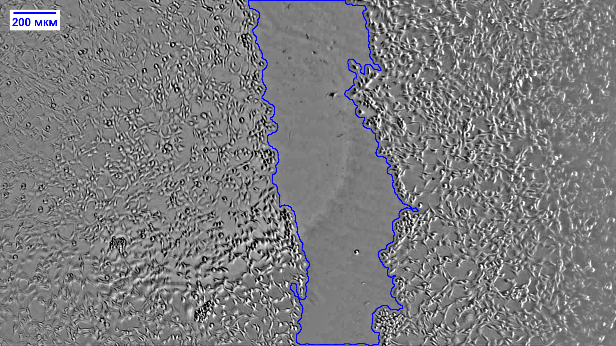
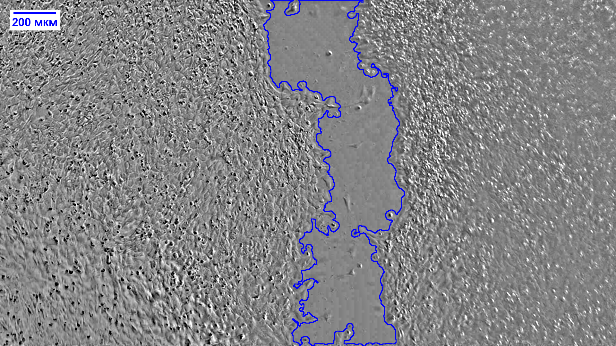
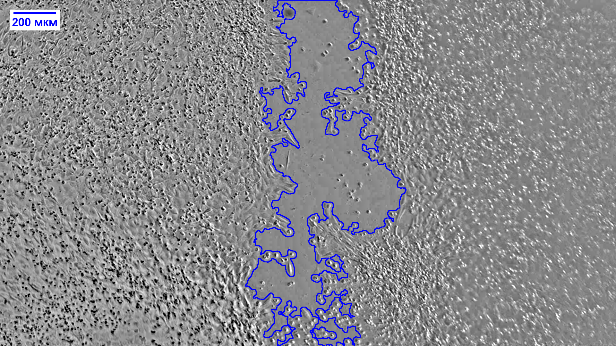
На рисунке 1 представлены оригинальные микрофотографии закрытия раневого пространства клетками C127 в контрольной группе и при воздействии DCPIB в концентрации 5 мкМ. Площадь раны составила 366717,0±8067,3 пикселей в контроле при 0 ч, 69649,0±9959,3 пикселей через 24 ч и 15208,4±1720,7 пикселей через 48 ч инкубации. Эти данные свидетельствуют о том, что в контрольных условиях наблюдалось выраженное, зависящее от времени увеличение степени закрытия раневого пространства. Степень закрытия раны (параметр WoundClosure) составила 81,4±2,3 % через 24 ч и 96,0±0,5 % через 48 ч (n=12) (Рис. 1, 2). Таким образом, за период 24 ч наблюдалось частичное, а через 48 ч наблюдалось практически полное закрытие раны.
В присутствии 5 мкМ DCPIB закрытие раневого пространства было существенно снижено по сравнению с контролем. Через 24 ч степень закрытия раны (параметр Wound Closure) составила 36,0±5,3 %, а через 48 ч – 33,7±5,0 % (n=12). Таким образом, обработка клеток C127 DCPIB в концентрации 5 мкМ приводила к выраженному снижению способности клеток к миграции как через 24, так и через 48 ч(Рис. 1, 2). Значение параметра Wound Closure, измеренное через 48 ч не отличалось статистически значимо от его значения при 24 ч. Этот результат согласуется с нашими данными, полученными в контроле, когда основное закрытие раны происходит в первые 24 часа и лишь небольшое дальнейшее закрытие раны происходит в следующие 24 часа инкубации (Рис. 2).
| Контроль | 5 мкМ | |
|---|---|---|
| 0 ч | 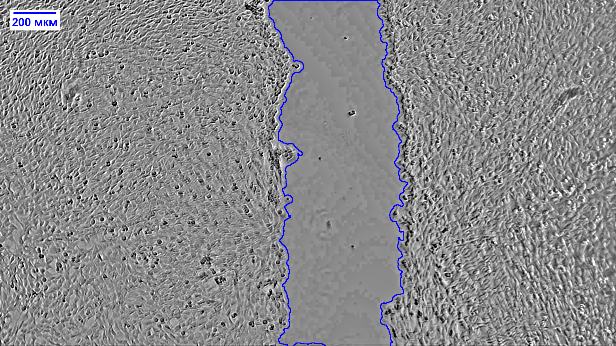 |
 |
| После 24 ч | 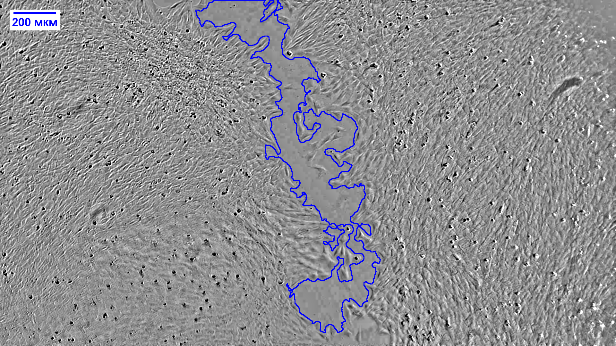 |
 |
| После 48ч | 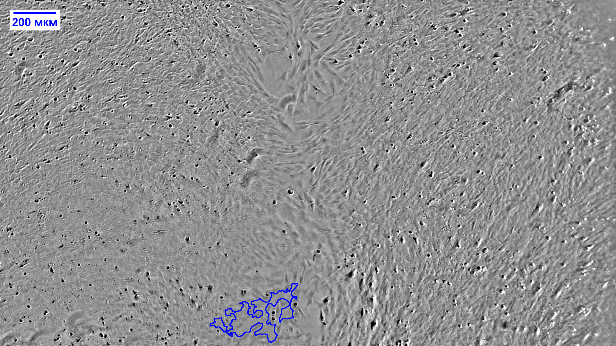 |
 |
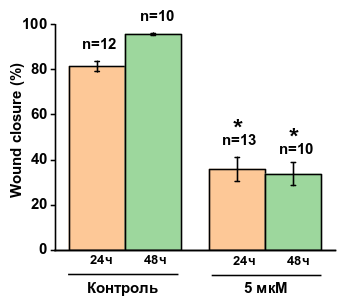
* - статистически значимое различие по сравнению с контролем через 24 и 48 ч, P < 0,05. n - количество экспериментов
Для количественной характеристики миграции также оценивали скорость закрытия раневого пространства. В контрольной группе данный показатель составил 8,8±0,4 пикселей/ч за первые 24 ч и 5,9±0,2 пикселей/ч за 48 ч. В присутствии 5 мкМ DCPIB скорость закрытия раневого пространства составляла 4,0±1,3 пикселей/ч через 24 ч и 1,3±0,5 пикселей/ч через 48 ч (рис. 3). Таким образом, воздействие DCPIB в концентрации 5 мкМ приводило к резкому снижению скорости закрытия раневого пространства клетками C127 по сравнению с контролем.
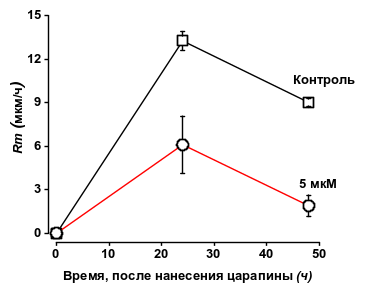
Полученные нами результаты показали выраженное снижение миграционной активности клеток C127 под воздействием селективного блокатора ОЗАК, DCPIB в концентрации 5 мкМ, что указывает на участие DCPIB-чувствительных ионных механизмов в регуляции клеточной миграции. Основным каналом, блокируемым DCPIB является ОЗАК, однако связывать данный эффект исключительно с этим транспортным путем следует с осторожностью, поскольку вклад ОЗАК может зависеть от типа клеток и условий эксперимента [5, 6]. Так, миграционная активность миобластов C2C12 и культуры клеток рака толстого кишечника HCT116 была нечувствительна ни к DCPIB, ни к подавлению экспрессии белка LRRC8A (обязательного компонента ОЗАК, исходно идентифицированного именно в этой линии) [6].
Заключение
Таким образом, воздействие DCPIB в концентрации 5 мкМ сопровождалось выраженным снижением миграционной активности клеток C127 и скорости закрытия раневого пространства. Полученные результаты свидетельствуют о значительной роли объем-активируемого анионного транспорта, а именно канала ОЗАК, в миграционной активности клеток рака молочной железы C127 мыши. Дальнейшие исследования, включающие генетическое подавление экспресси белка LRRC8A как основного компонента ОЗАК будут необходимы для подтверждения роли этого анионного канала в миграционном процессе.
Список литературы